12 de novembro de 2026
Mecanismos publicados descritos para a tirzepatida
Descarregar PDF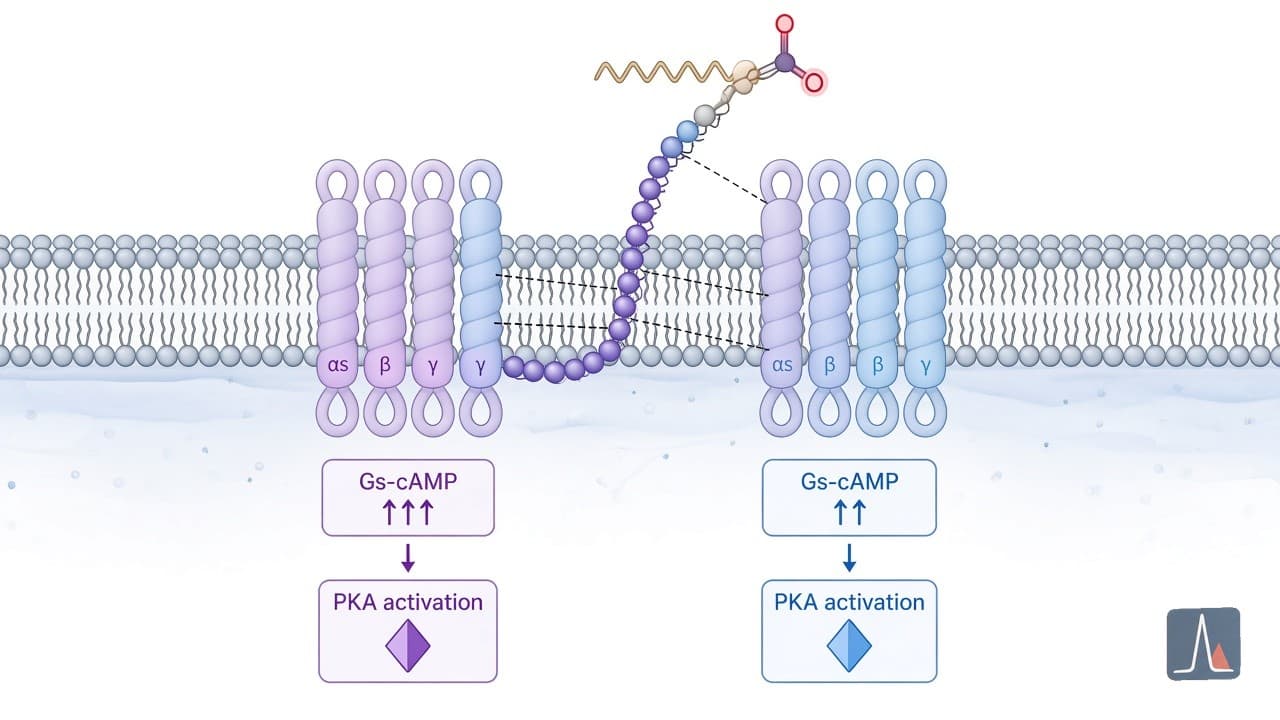
Estudos estruturais, in vitro, pré-clínicos e em ilhéus humanos publicados descrevem a tirzepatida como um agonista duplo desequilibrado dos recetores GIPR/GLP-1R, com sinalização tendenciosa de AMPc no recetor de GLP-1, que influencia a se
Mecanismos publicados descritos para a tirzepatida
A tirzepatida é um péptido sintético de 39 aminoácidos fornecido pela Rierink Compounds apenas para investigação laboratorial. Não é um medicamento. Relatos publicados de farmacologia de recetores, biologia estrutural, ensaios in vitro, modelos animais e preparações de ilhéus humanos descrevem as suas ações principalmente através de agonismo duplo no recetor do polipéptido insulinotrópico dependente da glicose (GIPR) e no recetor do péptido semelhante ao glucagon-1 (GLP-1R). Estes mecanismos integram a fisiologia das incretinas com propriedades farmacológicas concebidas, incluindo sinalização intracelular tendenciosa.
Identidade química e contexto de catálogo
A tirzepatida é concebida a partir da sequência nativa do GIP humano (1-42), com substituições de aminoácidos, incluindo resíduos de ácido 2-aminoisobutírico (Aib) nas posições 2 e 13 para estabilidade proteolítica, e uma fração de ácido gordo diácido C20 ligada por um ligante à lisina na posição 20. Esta acilação facilita a ligação não covalente à albumina, contribuindo para a farmacocinética prolongada observada em estudos fisiológicos pré-clínicos e humanos (semivida de aproximadamente 5 dias em relatos farmacocinéticos). No contexto de catálogo, posiciona-se ao lado de agonistas seletivos do GLP-1R, como a semaglutida, e de agonistas duplos e triplos, incluindo retatrutida, cagrilintida, survodutida, liraglutida e dulaglutida. Comparações publicadas destacam o agonismo duplo desequilibrado distintivo da tirzepatida relativamente a agentes seletivos do GLP-1R.
Farmacologia de recetores, dados estruturais e sinalização tendenciosa
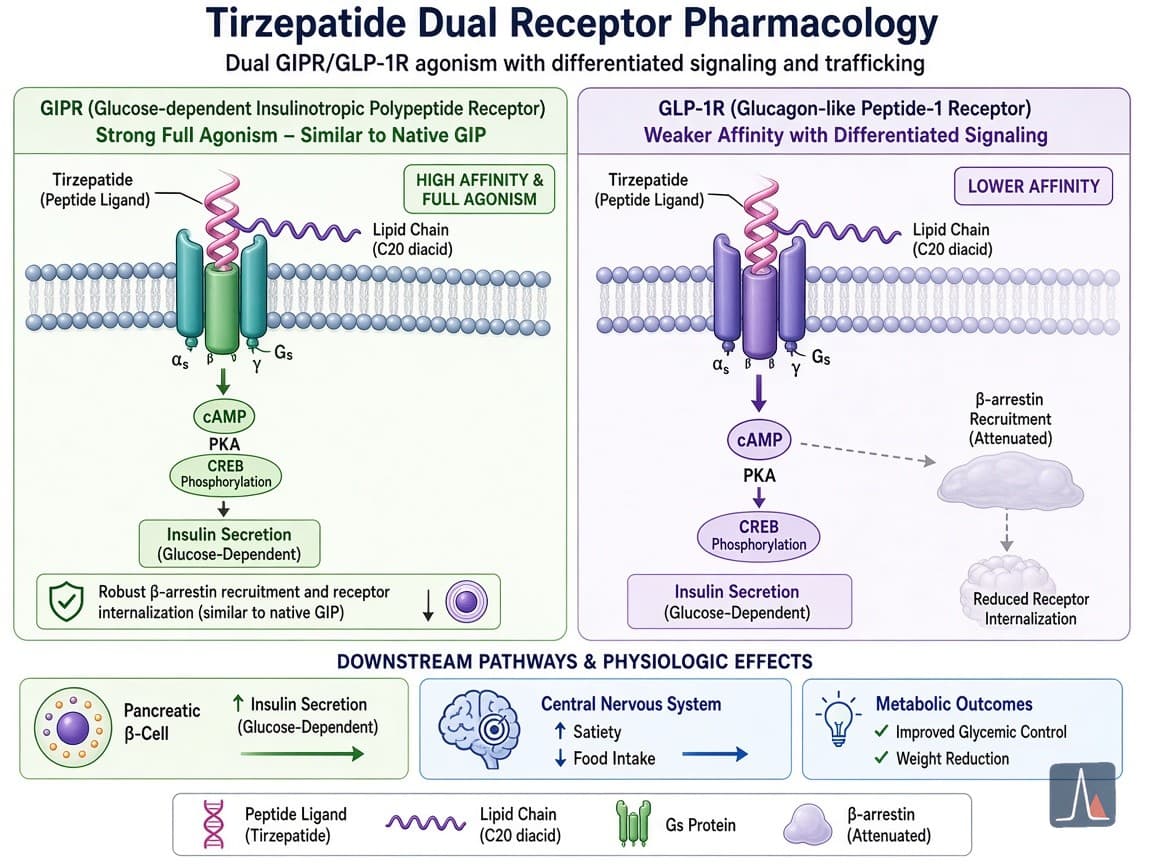
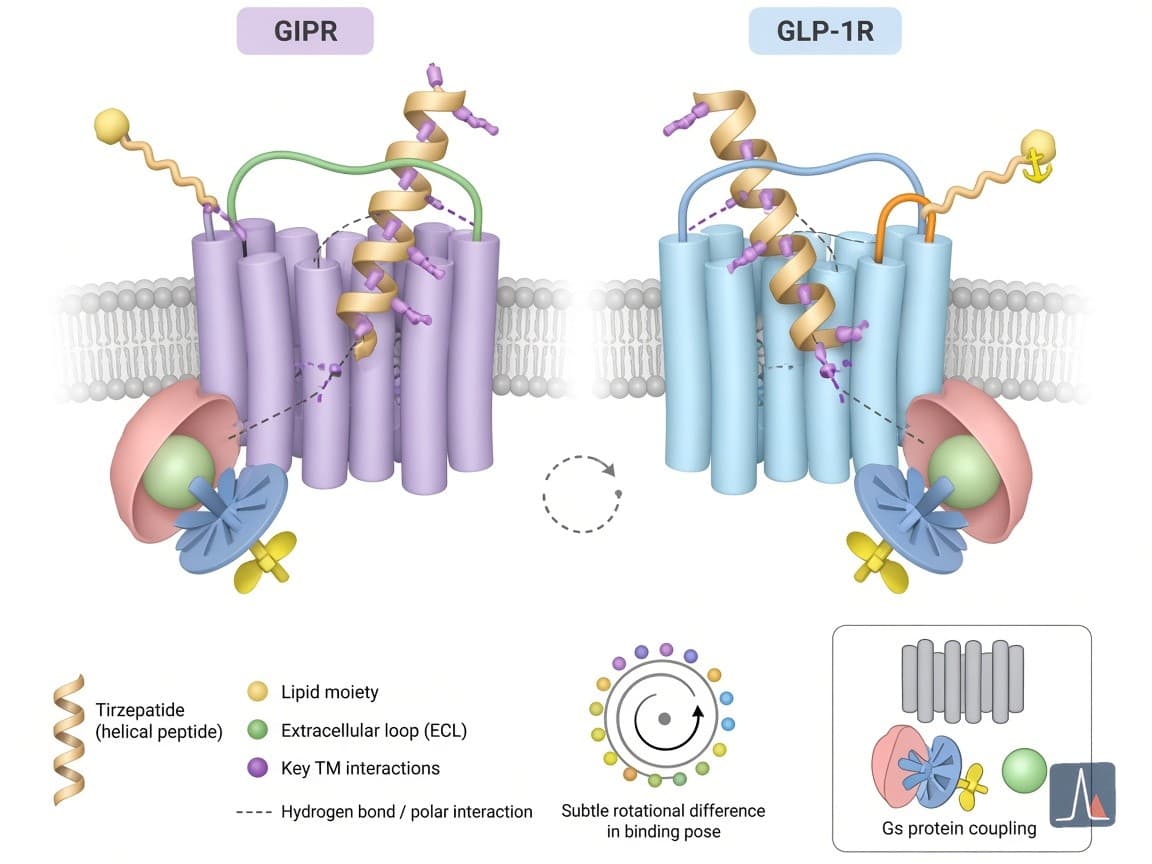
Estudos de farmacologia de recetores com linhas celulares recombinantes relatam que a tirzepatida apresenta elevada afinidade e potência no GIPR humano, comparáveis às do GIP nativo, atuando como agonista completo tanto das vias Gs/AMPc como das vias da β-arrestina. No GLP-1R, a afinidade é aproximadamente 5 vezes inferior e a potência para o AMPc é 13 a 20 vezes mais fraca do que a do GLP-1 nativo. Estruturas de microscopia crioeletrónica (crio-ME) (por exemplo, Zhao et al., Nat Commun 2022, doi:10.1038/s41467-022-28683-0; Sun et al., PNAS 2022, doi:10.1073/pnas.2116506119) revelam que a tirzepatida adota uma conformação helicoidal quando ligada a ambos os recetores, mas apresenta diferenças subtis na pose de ligação, em particular uma rotação de 8 graus no GIPR relativamente ao GLP-1R e interações distintas com as ansas extracelulares (ECL). A tirosina N-terminal e a fração lipídica contribuem para estas características.
Uma propriedade-chave relatada é o agonismo tendencioso no GLP-1R. Em contraste com o GLP-1 nativo ou com agonistas seletivos do GLP-1R, a tirzepatida ativa preferencialmente a via Gs/adenilato-ciclase/AMPc/proteína-cinase A (PKA), mostrando um recrutamento marcadamente reduzido de β-arrestina 1/2 e, consequentemente, menor internalização e dessensibilização do recetor. Este enviesamento está ligado a elementos específicos da sequência e à cadeia lateral acilada. Willard et al. (JCI Insight, 2020) demonstraram que a β-arrestina 1 limita as respostas insulinotrópicas ao GLP-1 nos ilhéus, mas que esta limitação está ausente para a tirzepatida, o que sugere um potencial de sinalização sustentada. No GIPR, a sinalização aproxima-se mais da do GIP nativo, sem enviesamento pronunciado. Estas características moleculares são descritas como produtoras de um perfil de agonista duplo «desequilibrado», com maior envolvimento relativo do GIPR nas exposições estudadas.
Evidência mecanística in vitro e ex vivo em ilhéus
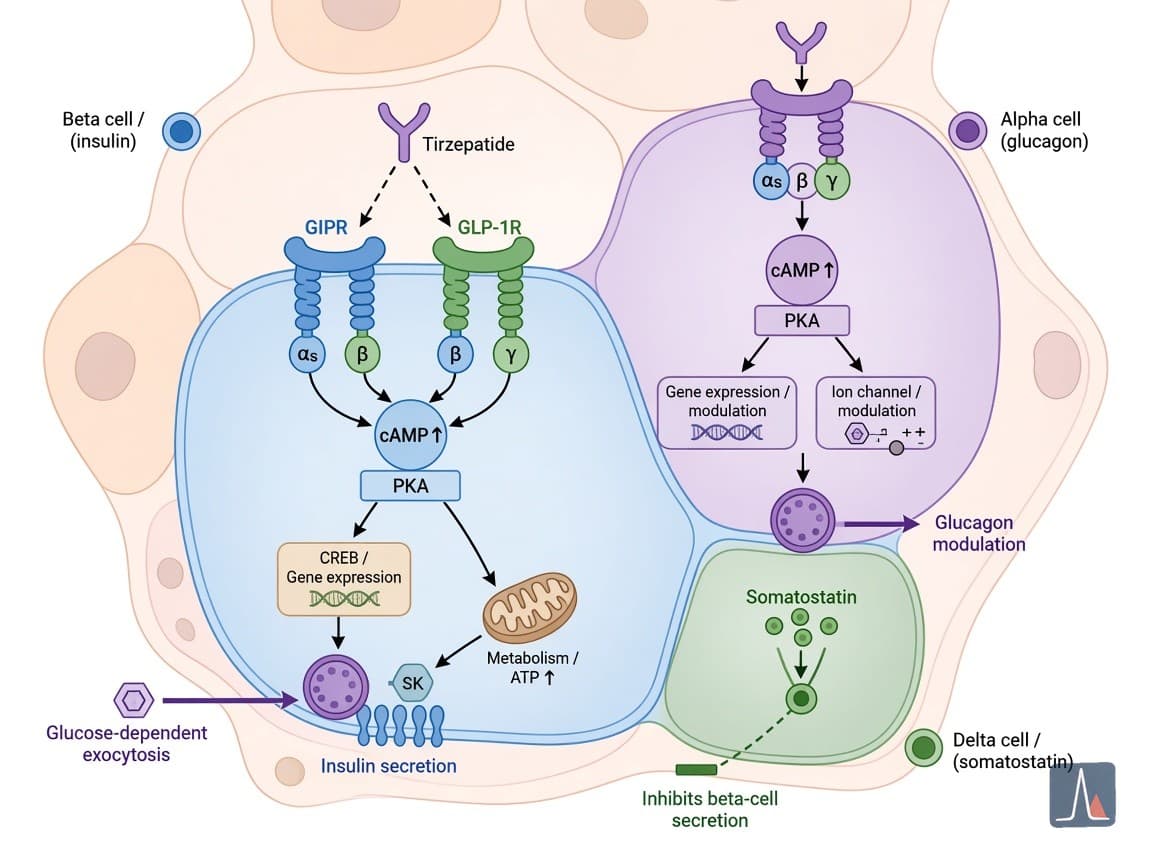
Ensaios in vitro em células HEK293 recombinantes transfectadas com recetores humanos confirmam o perfil desequilibrado e tendencioso através de medições de acumulação de AMPc, recrutamento de β-arrestina e tráfego de recetores. Preparações de ilhéus pancreáticos humanos (El et al., Nat Metab 2023) relatam que a tirzepatida estimula a secreção de insulina com contribuição substancial de ambos os recetores; o antagonismo farmacológico do GIPR atenua de forma consistente a resposta insulínica mais do que o antagonismo do GLP-1R em ilhéus humanos, em contraste com ilhéus de ratinho, nos quais predomina a mediação pelo GLP-1R devido a diferenças entre espécies na potência do GIPR. A tirzepatida também aumenta a secreção de glucagon e de somatostatina em ilhéus humanos através de ambos os recetores. Estes efeitos são dependentes da glicose nas células beta, em consonância com a fisiologia das incretinas, e prosseguem através do fecho de canais KATP mediado por AMPc/PKA/Epac, despolarização, influxo de cálcio e exocitose de grânulos de insulina.
Resultados nulos ou dependentes do contexto aparecem em alguns relatos. Em certos modelos de ratinho, a contribuição do agonismo do GIPR para a secreção aguda de insulina é mínima, o que realça considerações translacionais ao extrapolar dados de ilhéus de roedores para a fisiologia humana. Não foram identificados dados mecanísticos desfavoráveis consistentes sobre a ativação central dos recetores, mas persistem debates quanto à contribuição precisa do GIPR versus GLP-1R para os efeitos líquidos nos ilhéus entre espécies e estados metabólicos.
Relatos sobre vias do sistema nervoso central e gastrointestinais
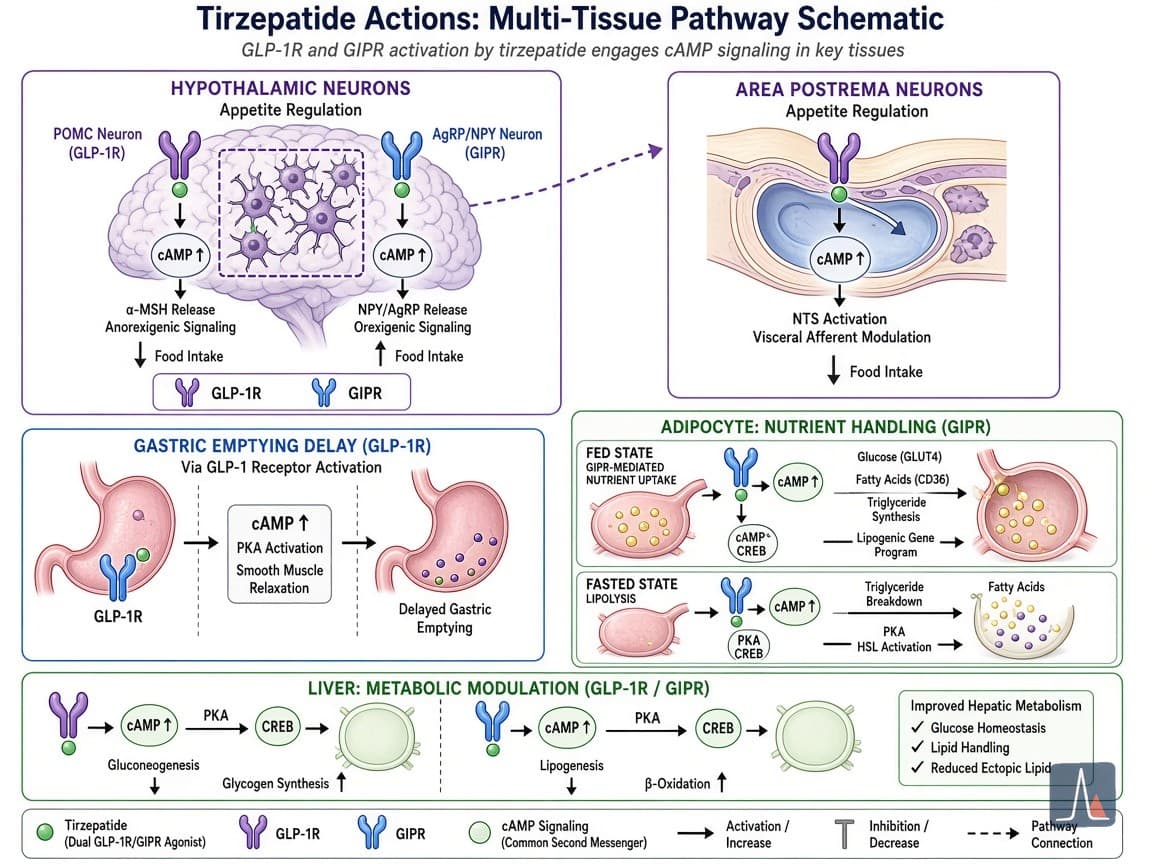
Estudos pré-clínicos em roedores relatam que a tirzepatida ativa o GIPR e o GLP-1R expressos em órgãos circunventriculares (área postrema, núcleo do trato solitário) e em núcleos hipotalâmicos (núcleo arqueado, núcleo paraventricular). O envolvimento duplo dos recetores é descrito como produtor de reduções sinérgicas da ingestão alimentar para além dos efeitos aditivos de agonistas seletivos, envolvendo populações neuronais distintas, incluindo neurónios GABAérgicos na área postrema e neurónios de neurotensina a jusante. A ativação do GIPR nestas regiões é relatada como potencialmente atenuadora da sinalização aversiva ou semelhante a náusea associada a uma forte estimulação do GLP-1R. O atraso do esvaziamento gástrico é atribuído principalmente ao agonismo do GLP-1R por vias vagais, com alguns relatos a notar taquifilaxia após exposição repetida em modelos animais.
Mecanismos metabólicos no tecido adiposo, no fígado e periféricos
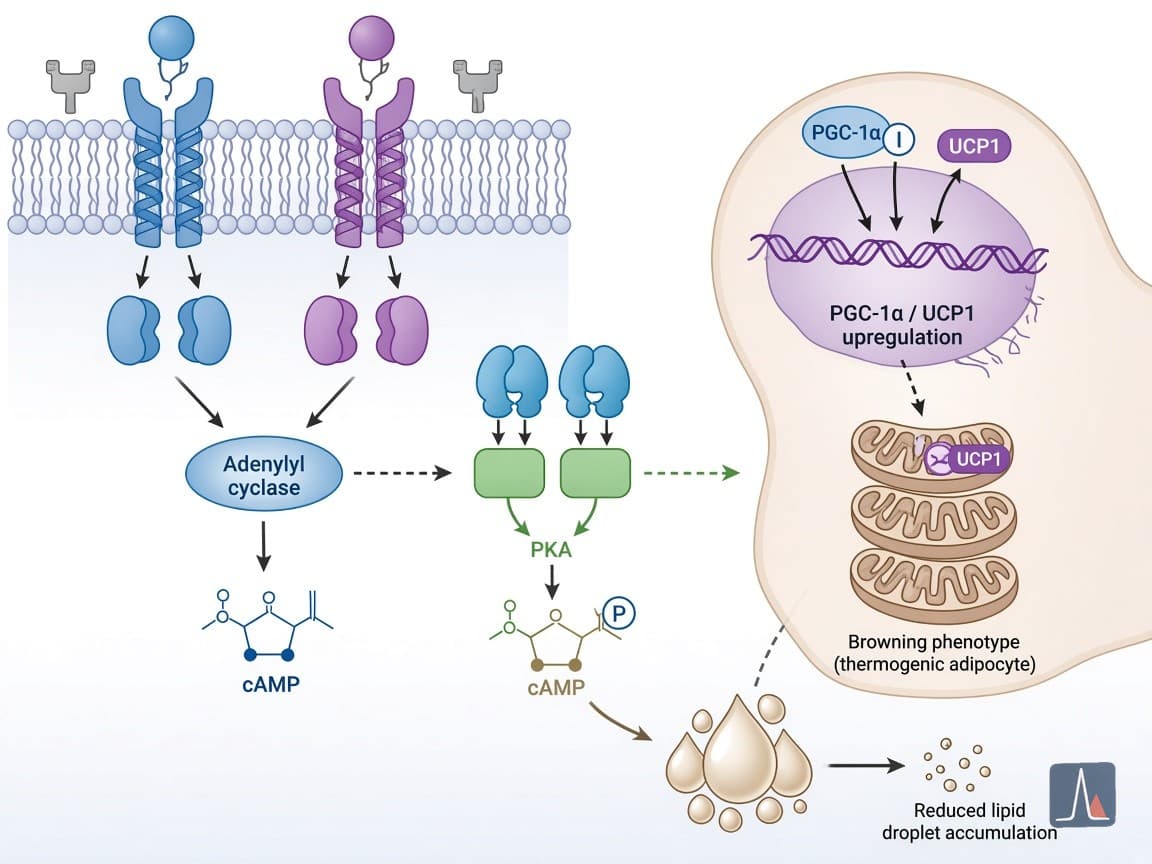
Estudos recentes in vitro e em animais enfatizam efeitos diretos mediados pelo GIPR em adipócitos, que expressam GIPR mas GLP-1R negligenciável. Regmi et al. (Cell Metab, 2024) relatam que o agonismo prolongado do GIPR (modelado por compostos semelhantes à tirzepatida) coopera com a insulina no estado alimentado para aumentar a captação de glicose, a síntese de triglicéridos (através de uma maior conversão de glicose em glicerol) e a atividade da lipase lipoproteica, promovendo a repartição de nutrientes para o tecido adiposo. Em estados de insulina baixa (jejum), o mesmo agonismo promove a lipólise e o efluxo de ácidos gordos. Em ratinhos obesos induzidos por dieta, isto associou-se a uma melhor depuração pós-prandial de triglicéridos e a uma maior captação de ácidos gordos pelo tecido adiposo branco. Relatos adicionais descrevem a ativação do eixo AMPc-PGC-1α-UCP1, conduzindo ao escurecimento do tecido adiposo branco e à redução da acumulação intracelular de lípidos em adipócitos 3T3-L1 e em modelos de ratinho obeso (estudo Eur J Pharmacol de 2026).
Em modelos hepáticos, relatam-se efeitos indiretos através de uma melhor sensibilidade à insulina e de uma menor lipogénese, a par de uma modulação mediada por recetores de genes de efluxo de colesterol (Hnf4a, Abcg5/8) em alguns estudos de ratinho com MAFLD. Dados pré-clínicos sugerem também contribuições para a sensibilidade à insulina no músculo esquelético e para vias protetoras cardiorrenais (anti-inflamatórias, antifibróticas) através da expressão de recetores nesses tecidos, embora muitos efeitos pareçam secundários às ações centrais e nos ilhéus.
Modelos integrados de vias multiorgânicas e implicações teóricas
A teoria derivada da distribuição de recetores e da integração pré-clínica sugere que a tirzepatida coordena sinalização sobreposta e complementar de GIPR/GLP-1R no pâncreas, no cérebro, no trato gastrointestinal, no tecido adiposo, no fígado e nos tecidos cardiovasculares para modular a homeostasia da glicose, dos lípidos e da energia. Uma revisão narrativa de 2026 (Galindo et al., Diabetes Ther, doi:10.1007/s13300-025-01804-w) sintetiza estes elementos em esquemas multiorgânicos que mostram como a sinalização tendenciosa do GLP-1R e a atividade robusta do GIPR podem produzir efeitos incretínicos sustentados com um manuseamento de nutrientes distinto do agonismo seletivo do GLP-1R. Modelos animais relatam de forma consistente maiores melhorias em marcadores de sensibilidade à insulina (por exemplo, HOMA-IR, adiponectina, IGFBP-1/2) e em índices de função das células beta (HOMA-B, razão proinsulina/insulina) com o agonismo duplo versus o monoagonismo do GLP-1R, com alguns componentes independentes do peso atribuídos à sinalização do GIPR no tecido adiposo.
Os resultados nulos ou mistos incluem contribuições variáveis do GIPR para os efeitos no apetite entre espécies e modelos, e evidência limitada de que o agonismo do GIP isoladamente melhore a secreção de insulina em células beta de diabetes tipo 2 de longa duração (uma preocupação histórica agora parcialmente abordada por dados de agonistas duplos tendenciosos). Não existem dados mecanísticos humanos desfavoráveis em grande escala que contradigam a ativação central dos recetores, mas as limitações translacionais da farmacologia do GIPR do roedor para o ser humano são notadas de forma recorrente.
Contexto da evidência, limitações recorrentes e implicações de catálogo
A evidência mecanística é mais forte ao nível do recetor e celular (crio-ME, ensaios recombinantes, ilhéus humanos) e em modelos animais pré-clínicos de obesidade e diabetes. Estudos fisiológicos e de biomarcadores em seres humanos fornecem dados de apoio sobre o envolvimento das vias, mas são menos numerosos. As limitações recorrentes incluem diferenças entre espécies na potência e na sinalização do GIPR, uma forte dependência de sistemas recombinantes que podem não recapitular plenamente a expressão nativa dos recetores ou a heterodimerização, e a dificuldade de isolar as contribuições do GIPR versus GLP-1R in vivo sem antagonistas seletivos. Muitos resultados derivam de trabalho patrocinado pela indústria ou em colaboração com o desenvolvedor da tirzepatida.
Para investigadores de laboratório, estes mecanismos publicados posicionam a tirzepatida como um composto-ferramenta útil para interrogar a sinalização dupla das incretinas, o agonismo tendencioso e a biologia do GIPR específica de tecidos. Entradas relacionadas do catálogo, como a semaglutida (GLP-1R seletivo) e agonistas triplos emergentes como a retatrutida, permitem estudos mecanísticos comparativos. Trabalho futuro poderá esclarecer melhor o tráfego de recetores a longo prazo, potenciais efeitos de heterodímeros e o mapeamento neuronal detalhado do SNC.
Fontes
- Galindo RJ et al. Insights into the Mechanism of Action of Tirzepatide: A Narrative Review. Diabetes Ther. 2026;17(1):19-40. doi:10.1007/s13300-025-01804-w. PMID: 41196501. (Revisão que sintetiza mecanismos multiorgânicos.)
- Willard FS et al. Tirzepatide is an imbalanced and biased dual GIP and GLP-1 receptor agonist. JCI Insight. 2020;5(19):e140532. doi:10.1172/jci.insight.140532. (Farmacologia in vitro fundacional.)
- Zhao F et al. Structural insights into multiplexed pharmacological actions of tirzepatide and peptide 20 at the GIP, GLP-1 or glucagon receptors. Nat Commun. 2022;13(1):1057. doi:10.1038/s41467-022-28683-0. PMCID: PMC8881610. (Estruturas de crio-ME.)
- Sun B et al. Structural determinants of dual incretin receptor agonism by tirzepatide. PNAS. 2022;119(13):e2116506119. doi:10.1073/pnas.2116506119. PMCID: PMC9060465. (Crio-ME e dinâmica molecular.)
- El K et al. The incretin co-agonist tirzepatide requires GIPR for hormone secretion from human islets. Nat Metab. 2023;5(6):945-954. doi:10.1038/s42255-023-00811-0. (Dados de secreção em ilhéus humanos.)
- Regmi A et al. Tirzepatide modulates the regulation of adipocyte nutrient metabolism through long-acting activation of the GIP receptor. Cell Metab. 2024;36(7):1534-1549.e7. doi:10.1016/j.cmet.2024.05.010. (Mecanismos do GIPR específicos de adipócitos.)
- Relatos pré-clínicos de apoio adicionais sobre o escurecimento pelo eixo AMPc-PGC-1α-UCP1 (Eur J Pharmacol 2026) e revisões integradas até 2026.
Todos os materiais destinam-se apenas a investigação laboratorial.
Mais notas
- Achados favoráveis e desfavoráveis sobre a AdipotideEstudos pré-clínicos em murganhos e macacos obesos referem que a Adipotide provoca apoptose dirigida da vasculatura do tecido adiposo branco, conduzindo a uma perda substancial de gordura e a uma melhoria da resistência à insulina; no entan
- Resultados favoráveis e desfavoráveis sobre o 5-Amino-1MQEstudos pré-clínicos in vitro e em modelos animais referem que o 5-Amino-1MQ, um inibidor de NNMT de pequena molécula fornecido apenas para investigação laboratorial, aumenta o NAD+ e o SAM nos adipócitos, suprime a lipogénese, atenua a obe
- Achados favoráveis e desfavoráveis sobre o AdamaxNenhum estudo revisto por pares caracteriza ou testa o péptido de investigação comercializado como Adamax. Os sinais favoráveis descritos para o heptapéptido precursor Semax relativamente à regulação positiva de BDNF/TrkB, à neuroproteção e
Toda a informação e os produtos referidos destinam-se exclusivamente a utilização laboratorial e de investigação. Não se destinam a uso humano ou veterinário. Não se destinam a diagnosticar, tratar, curar ou prevenir qualquer doença.