23 de octubre de 2026
Informes publicados sobre GHK-Cu
Descargar PDF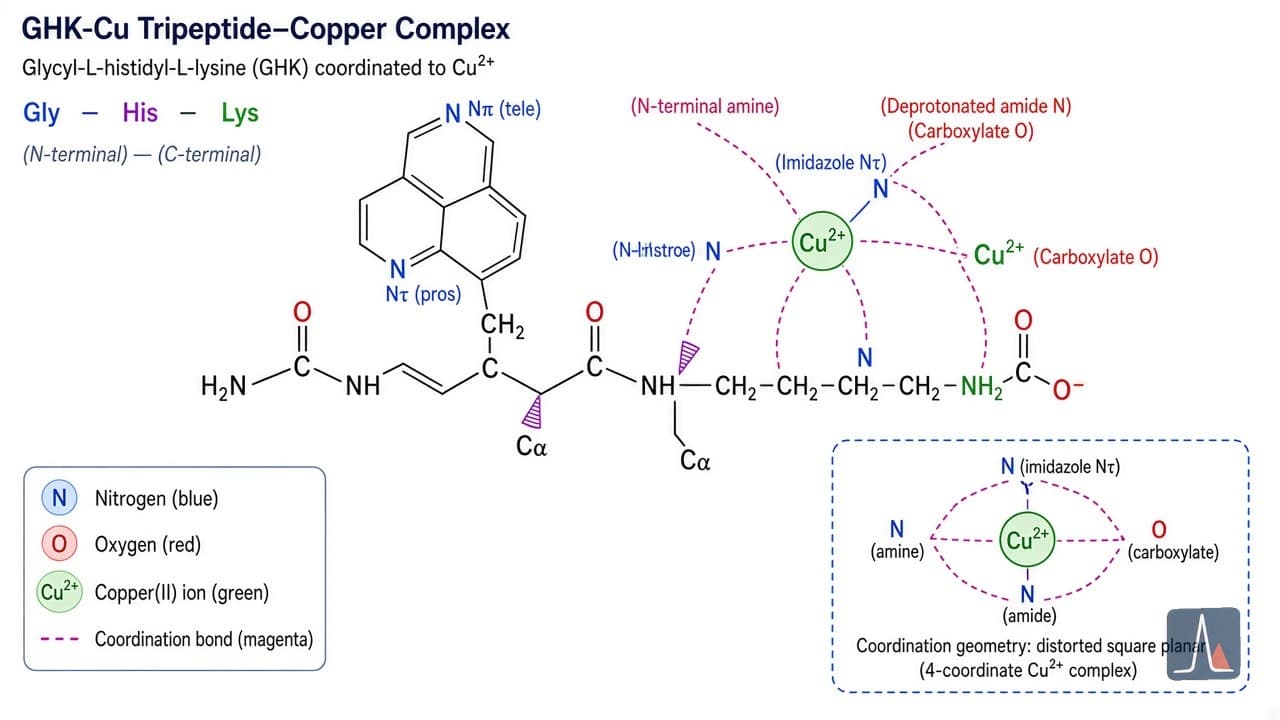
Los artículos indexados de ciencia celular, animal y cosmética describen GHK-Cu como un tripéptido de unión al cobre estudiado en lecturas de expresión génica y de matriz, distinto del octapéptido cosmético dirigido a SNARE y de los péptidos de modelos de lesión ya br
Informes publicados sobre GHK-Cu
Los artículos indexados de ciencia celular, animal y cosmética describen GHK-Cu como un tripéptido de unión al cobre estudiado en lecturas de expresión génica y de matriz, distinto del octapéptido cosmético dirigido a SNARE y de los péptidos de modelos de lesión ya reseñados, y dichos registros no establecen el uso en viales de investigación. GHK-Cu se destina únicamente a la investigación de laboratorio.
Estos registros no establecen que ningún material de investigación de Rierink sea un medicamento, trate afección alguna ni sea seguro o eficaz para su uso en personas o animales.
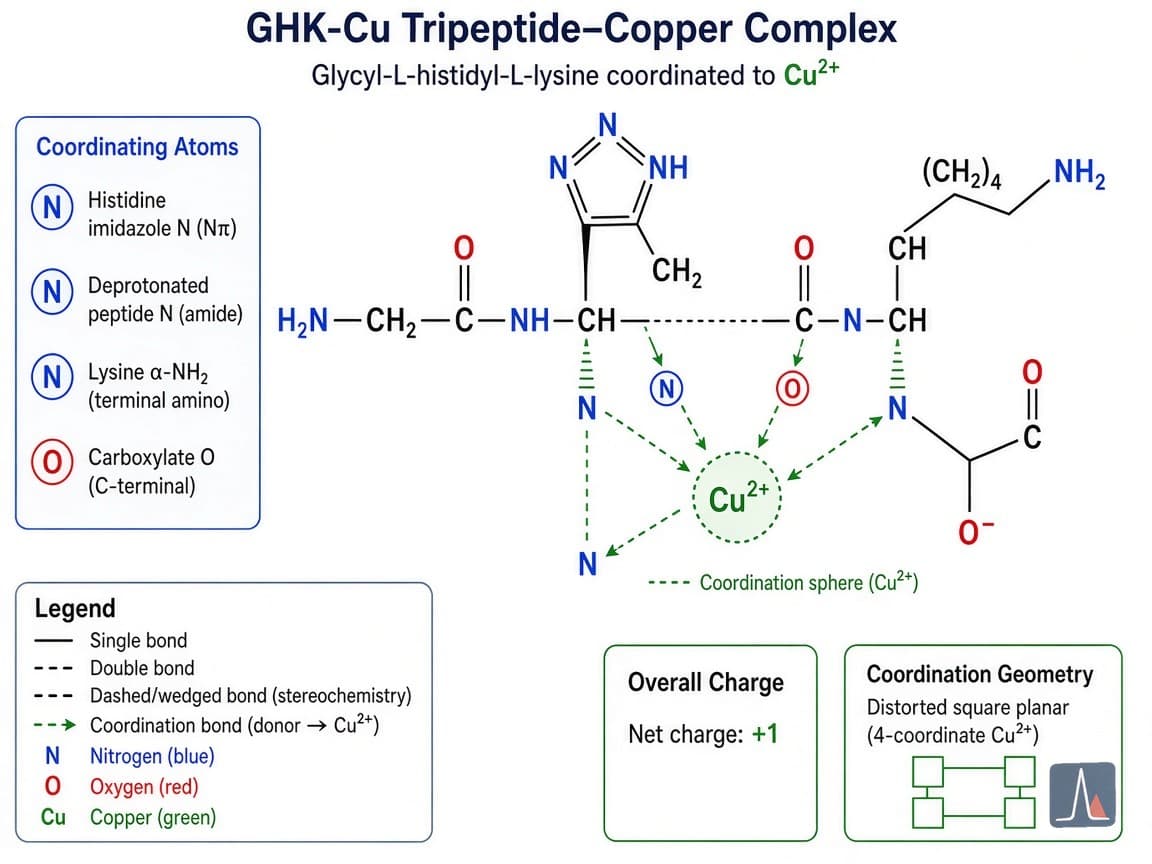
Estructura química del complejo de cobre de glicil-L-histidil-L-lisina.
Identidad química y contexto del catálogo
GHK-Cu es el complejo de cobre(II) del tripéptido glicil-L-histidil-L-lisina. El apopéptido GHK se presenta de forma natural en el plasma, la saliva y la orina humanos como fragmento de proteínas de mayor tamaño, tales como el colágeno Iα2 y la proteína matricelular SPARC; funciona como matricriptina. GHK se une a Cu²⁺ con alta afinidad, comparable a la del sitio de transporte de cobre de la albúmina, y forma un complejo GHK-Cu estable que puede actuar tanto como vehículo de aporte de cobre como molécula de señalización. Las concentraciones plasmáticas de GHK disminuyen con la edad, desde aproximadamente 200 ng/mL en adultos jóvenes hasta unos 80 ng/mL a los 60 años. En el catálogo de Rierink, GHK-Cu se suministra como material de grado de investigación para la investigación de laboratorio de sus efectos sobre la expresión génica, la dinámica de la matriz extracelular (ECM) y las lecturas de remodelación celular.
La bibliografía sobre GHK-Cu es distinta de la relativa a SNAP-8 (acetyl octapeptide-3), que actúa sobre las proteínas SNARE para reducir la liberación de neurotransmisores en ensayos cosméticos de arrugas, y de péptidos sintéticos de modelos de lesión tales como BPC-157 o fragmentos de TB-500 que se han examinado principalmente en contextos de citoprotección o de unión a la actina. En cambio, los informes indexados sobre GHK-Cu se centran en sus funciones en la remodelación transcripcional amplia y en la síntesis/degradación equilibrada de la matriz.
Estudios fundamentales in vitro sobre la remodelación de la matriz y los fibroblastos (in_vitro papers, 1988–2010)
Los primeros trabajos de cultivo celular establecieron GHK-Cu como modulador del comportamiento de los fibroblastos y de la producción de ECM. Un estudio in vitro de 1988 realizado por Maquart y colaboradores demostró que concentraciones nanomolares de GHK-Cu estimulaban la síntesis de colágeno en fibroblastos humanos cultivados sin alterar las tasas de proliferación celular. Trabajos posteriores de la década de 1990 examinaron los efectos sobre los glucosaminoglucanos (GAGs) y los proteoglucanos de pequeño tamaño. Un estudio in vitro y ex vivo de 1999 informó de que GHK-Cu aumentaba la expresión y la activación de la metaloproteinasa de la matriz 2 (MMP-2) en cultivos de fibroblastos, al tiempo que elevaba los inhibidores tisulares de las metaloproteinasas (TIMPs), lo que sugiere una función en el recambio equilibrado de la ECM más que en una simple acumulación.
Experimentos in vitro adicionales mostraron la quimioatracción por GHK-Cu de macrófagos, mastocitos y células endoteliales capilares; la supresión del daño por radicales libres; y el aumento de la producción de decorina, que organiza las fibrillas de colágeno recién depositadas. Estas lecturas se observaron a concentraciones de picomolar a nanomolar baja, en consonancia con un mecanismo de señalización y no únicamente con un mecanismo nutricional de aporte de cobre. Las limitaciones de estos artículos fundamentales incluyen la dependencia de líneas de fibroblastos primarias o inmortalizadas, la ausencia de curvas completas de dosis-respuesta en algunos experimentos y la exploración limitada de la especiación del cobre (GHK-Cu intacto frente a Cu²⁺ libre o apo-GHK).
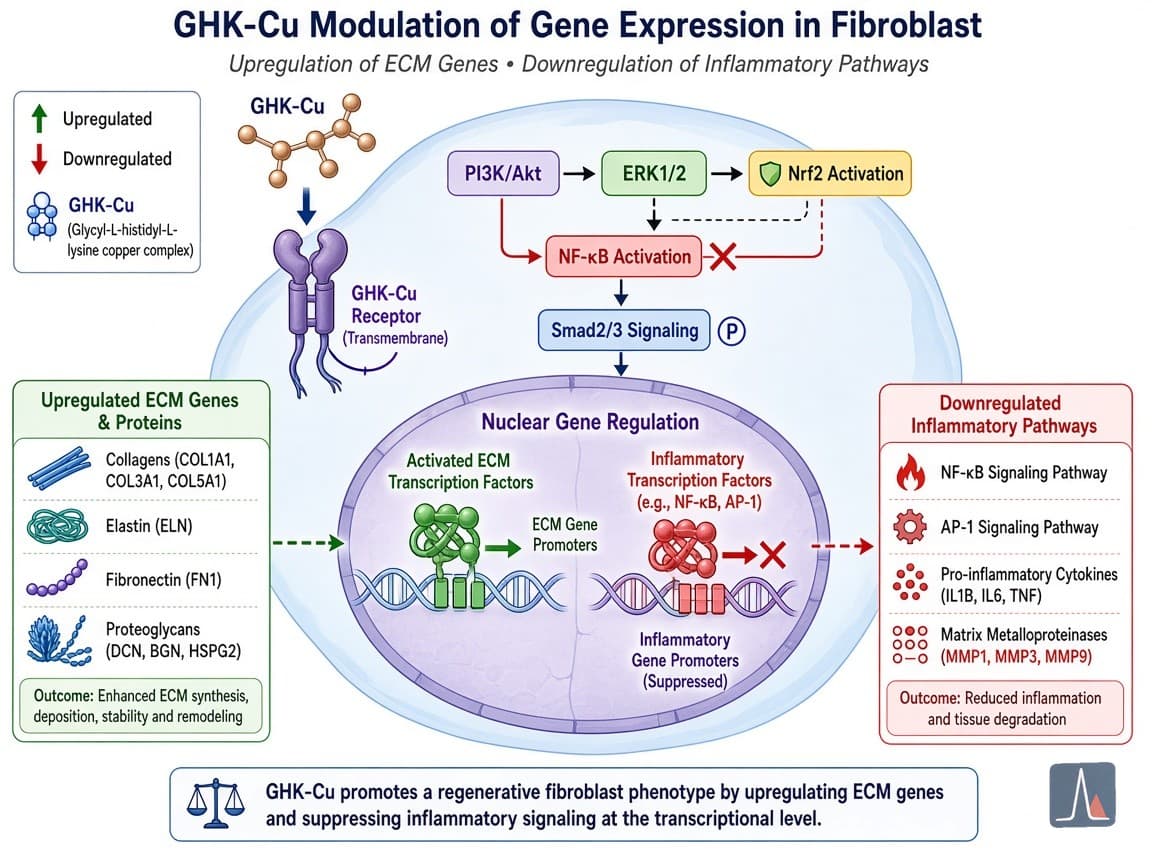
Visión general de la remodelación transcripcional descrita en los análisis CMap de GHK-Cu.
Informes sobre expresión génica y remodelación transcriptómica (in_vitro and method papers, 2010–2018)
Una serie de análisis transcriptómicos que emplearon la base de datos Broad Institute Connectivity Map (CMap) reveló que GHK-Cu modula la expresión de una fracción sorprendentemente amplia del genoma humano. En 2014, Pickart, Vasquez-Soltero y Margolina informaron de que GHK alteró la expresión de más de 4.000 genes en al menos un 50 %, con aproximadamente un 31 % de los transcritos medidos afectados. En modelos celulares de enfermedad (fibroblastos pulmonares de EPOC y líneas de cáncer metastásico), GHK tendía a reajustar las firmas génicas patológicas hacia las de células más sanas o más jóvenes. Las categorías reguladas al alza incluían genes de la MEC (colágeno I, III, elastina, decorina, múltiples enzimas biosintéticas de GAG), enzimas antioxidantes (SOD1, catalasa), vías de reparación del ADN (47 genes al alza, 5 a la baja) y componentes del sistema ubiquitina-proteasoma. Los transcritos regulados a la baja incluían con frecuencia mediadores proinflamatorios (miembros de la vía NF-κB, TGF-β1 en determinados contextos), fibrinógeno y proteasas seleccionadas o genes asociados a la metástasis.
Un artículo de 2017 amplió estas observaciones a genes relevantes para el sistema nervioso, mostrando una posible modulación de vías vinculadas al estrés oxidativo, la inflamación y el soporte neurotrófico en modelos neuronales y gliales. La revisión de 2018 de Pickart y Margolina sintetizó estos hallazgos de CMap con datos matriciales anteriores, proponiendo que las diversas acciones protectoras de GHK-Cu (antiinflamatorias, antioxidantes, proregenerativas) podrían explicarse por una reprogramación transcripcional coordinada. Estos informes utilizaron datos de micromatrices o de RNA-seq procedentes de células cultivadas expuestas a GHK o GHK-Cu; constituyen evidencia correlativa y no causal de la función in vivo. Las limitaciones incluyen un solapamiento considerable de autoría con el descubridor original, el uso de líneas celulares que pueden no recapitular plenamente el contexto tisular y el hecho de que los cambios de expresión génica se midieron en puntos temporales únicos sin una validación proteómica exhaustiva en todos los casos.
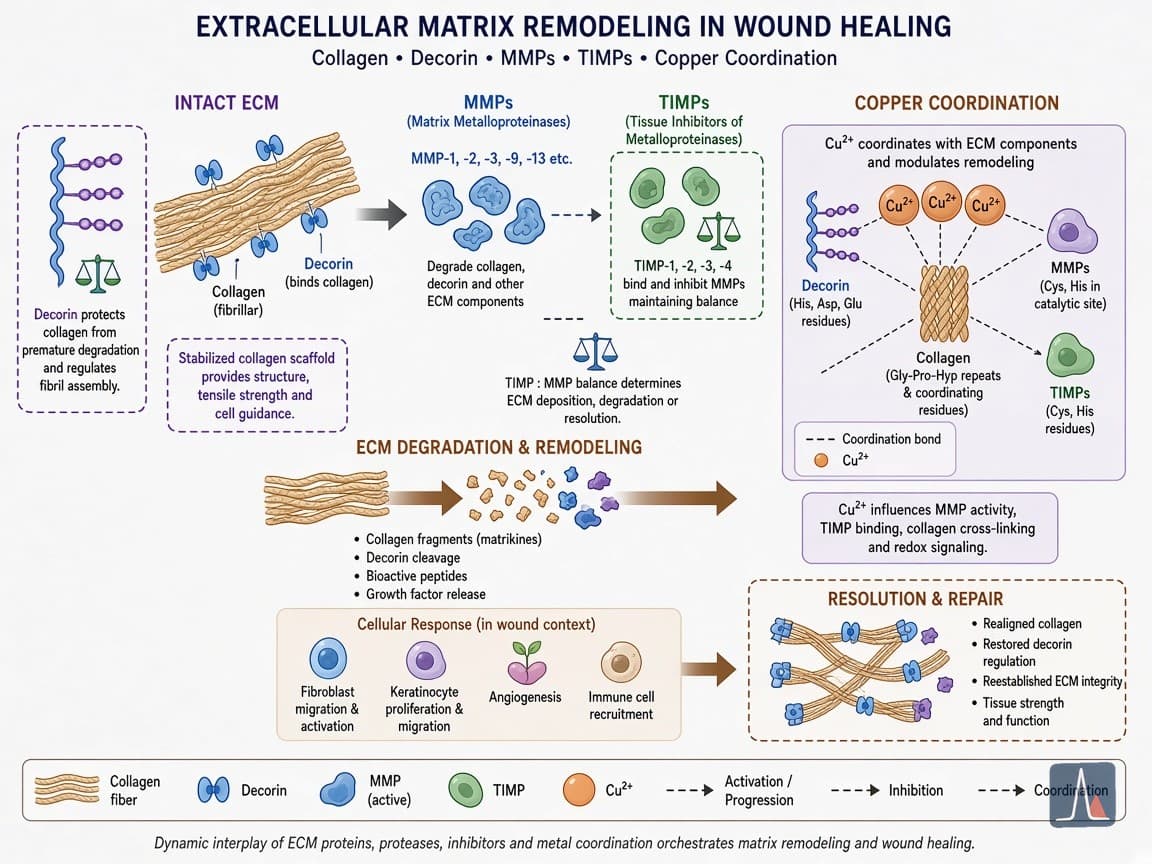
Síntesis de la matriz, equilibrio de degradación y procesos dependientes del cobre estudiados en la bibliografía sobre GHK-Cu.
Modelos animales preclínicos de cicatrización de heridas, angiogénesis y fibrosis (artículos en animales, 1993–2026)
Los modelos de cámara de herida en rata aportaron una confirmación in vivo temprana de los efectos sobre la matriz. Un estudio de 1993 publicado en Journal of Clinical Investigation demostró aumentos dependientes de la dosis del peso seco, del colágeno total, del contenido de GAG y del ADN en esponjas de alcohol polivinílico implantadas por vía subcutánea en ratas; el ARNm de colágeno de tipo I y de tipo III se encontraba elevado, y el aspecto histológico mostraba un colágeno más organizado en patrón «basket-weave». Estudios posteriores en roedores examinaron heridas por escisión, diabéticas e isquémicas. El tratamiento con GHK-Cu se asoció, en varios informes, a una reepitelización más rápida, un aumento del tejido de granulación, una angiogénesis potenciada (medida por la densidad vascular o la expresión de VEGF) y una reducción de los marcadores inflamatorios.
También se han explorado modelos pulmonares. En modelos de enfisema y silicosis en roedores (década de 2010–2024), GHK-Cu o constructos relacionados redujeron la fibrosis, disminuyeron la señalización de TGF-β/Smad en algunos contextos, activaron las vías antioxidantes de Nrf2 y mejoraron la arquitectura alveolar. Los modelos de folículo piloso y de quemadura por escaldadura en ratones mostraron un aumento del tamaño del folículo o una cicatrización acelerada cuando GHK-Cu se administró en liposomas o apósitos. Un subconjunto de estudios examinó tejido irradiado o envejecido, con una restauración parcial de la capacidad proliferativa en fibroblastos. Aunque muchos informes en animales describen lecturas favorables de la matriz y de la expresión génica, los resultados no fueron uniformemente positivos; algunos modelos de tejido irradiado mostraron solo efectos transitorios o modestos, y parecieron necesarios vehículos de administración óptimos (liposomas, andamios de colágeno) para una actividad robusta. Las limitaciones comunes a esta bibliografía incluyen tamaños de grupo reducidos, pautas de dosificación variables (no comunicadas aquí), respuestas específicas de especie y el uso frecuente de administración tópica o local en lugar de sistémica.
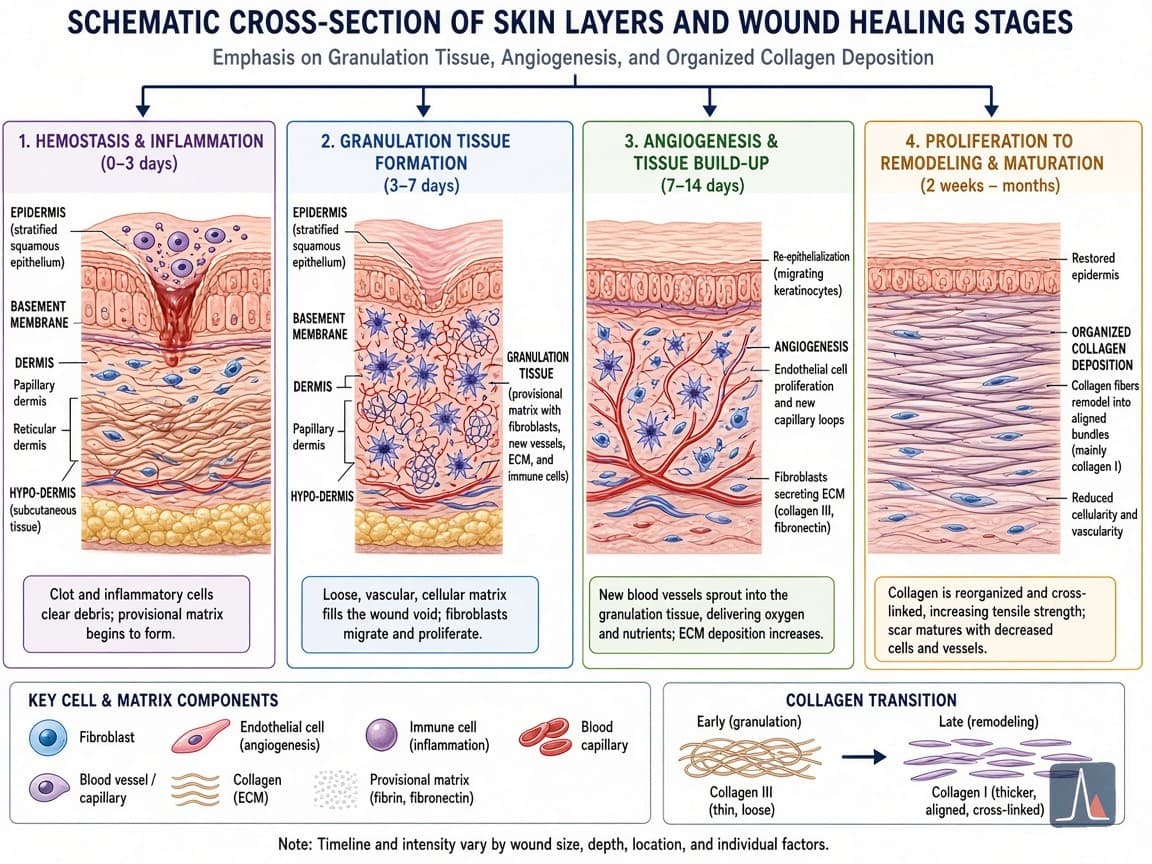
Parámetros de lectura de modelos preclínicos de heridas examinados en estudios con animales de GHK-Cu.
Ciencia cosmética, formulación, liberación y estudios cutáneos ex vivo (artículos de ciencia cosmética y de métodos, 2005–2026)
Dado que GHK-Cu es hidrófilo y se enfrenta a barreras de penetración del estrato córneo, los artículos de ciencia cosmética se han centrado en estrategias de formulación. La encapsulación liposomal, los vehículos de nanopartículas y los conjugados de hialuronano se han examinado en estudios de difusión en células de Franz con piel de cadáver porcino o humano; estos enfoques aumentaron el depósito dérmico respecto al péptido libre. Los modelos in vitro de equivalentes cutáneos y los explantes de piel humana ex vivo demostraron una regulación al alza del ARNm o de la proteína de colágeno, elastina y decorina tras la exposición a GHK-Cu, con cierta preservación de marcadores de troncalidad de queratinocitos (p63). Se desarrollaron métodos analíticos para cuantificar GHK-Cu en matrices cosméticas (HPLC, espectrometría de masas) a fin de evaluar la estabilidad y la especiación del cobre.
Varios artículos informaron de que GHK-Cu podía modular el equilibrio MMP/TIMP en células cutáneas cultivadas o en explantes de formas que se preveía que favorecieran la remodelación frente a la formación de cicatrices. Trabajos recientes (década de 2020) han explorado la liberación asistida por microagujas o plataformas de parches disolubles para sortear la barrera epidérmica, y han mostrado una captación mejorada en modelos ex vivo. Estos estudios son en gran medida mecanísticos u orientados a la formulación y no sustituyen a los ensayos clínicos controlados de resultados. Las limitaciones incluyen el patrocinio de la industria en muchos artículos cosméticos, el uso de concentraciones no fisiológicas en algunos ensayos y la dificultad para distinguir los efectos del complejo intacto de los del cobre liberado o de los fragmentos peptídicos.
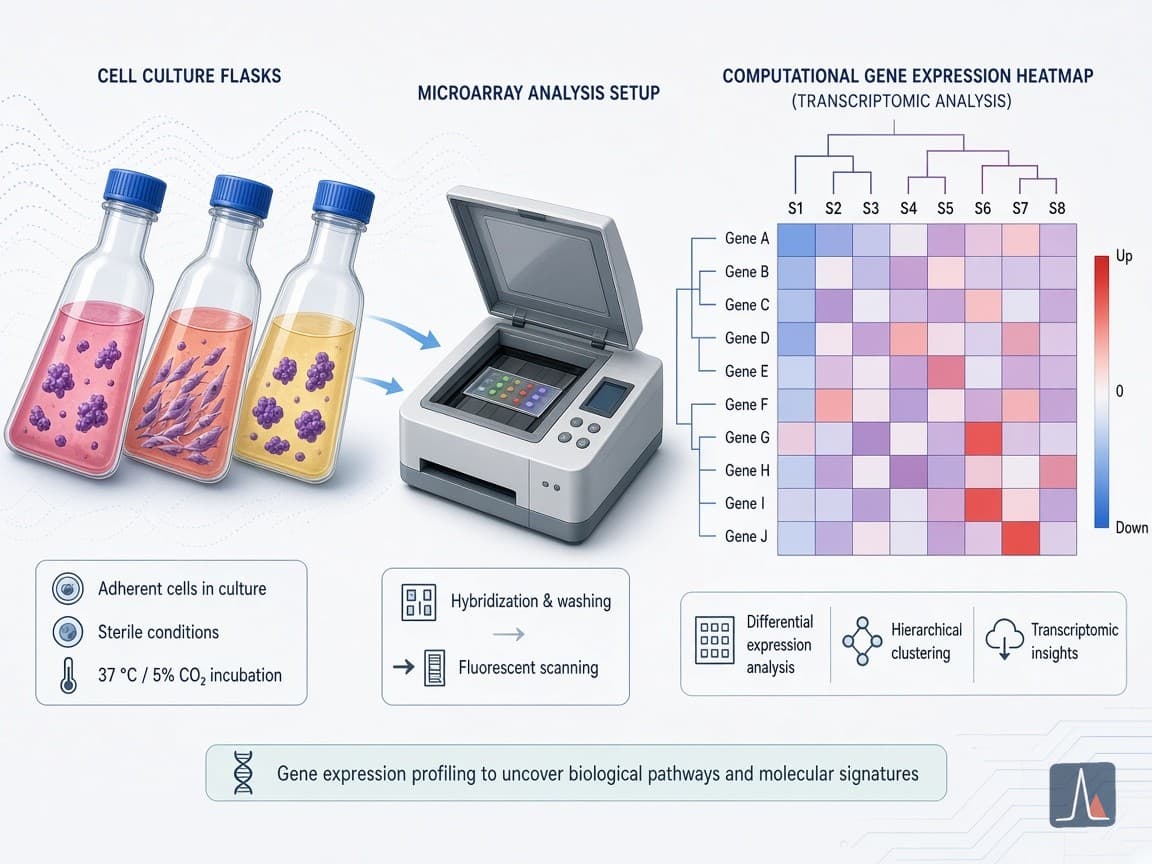
Flujo de trabajo de laboratorio para experimentos in vitro de expresión génica y de lectura de matriz.
Informes piloto tópicos humanos limitados (estudios clínicos y observacionales pequeños, 1992–2026)
Los datos en humanos consisten principalmente en estudios tópicos pequeños en contextos dermatológicos o cosméticos. Un ensayo multicéntrico aleatorizado de 1992 en úlceras venosas y diabéticas comparó una crema de tripéptido-cobre con el vehículo y la sulfadiazina de plata; los resultados fueron dispares, y algunos análisis de subgrupos mostraron un mayor cierre de úlceras plantares de mayor tamaño, pero el rendimiento global no fue sistemáticamente superior al de los controles. Un estudio aleatorizado de 2006 tras un resurfacing con láser de CO₂ (n≈13 participantes que completaron el estudio) no halló una mejoría objetiva significativa del eritema, las arrugas ni las puntuaciones de médicos cegados frente al régimen con vehículo, aunque los cuestionarios de satisfacción de los pacientes favorecieron el brazo de GHK-Cu. Posteriores estudios piloto cosméticos pequeños de cara dividida o herida dividida (década de 2010–2026) informaron de mejorías subjetivas de la firmeza cutánea, las líneas finas o la densidad capilar en algunas cohortes, pero las medidas instrumentales objetivas (cutometría, profilometría) no fueron uniformemente positivas y a menudo carecían de seguimiento a largo plazo.
Un ensayo de fase 2 de 2026 con gel tópico de GHK-Cu sobre heridas estandarizadas de biopsia por sacabocados está registrado, pero carece de resultados de eficacia publicados en el momento de redactar este texto. Ningún ensayo controlado aleatorizado publicado ha examinado el GHK-Cu sistémico o inyectable en seres humanos. Estos limitados informes en seres humanos ilustran la brecha entre los datos mecanísticos preclínicos y la traslación clínica validada; muchos fueron de pequeño tamaño, no estuvieron enmascarados respecto de los criterios de valoración subjetivos o presentaron factores de confusión por procedimientos concomitantes.
Revisiones sistemáticas recientes, síntesis mecanísticas y limitaciones recurrentes (artículos de revisión y revisiones sistemáticas, 2014–2026)
Pickart y Margolina publicaron revisiones integradoras en 2014 (Biomed Res Int), 2015, 2017 (genes del sistema nervioso) y 2018 (Int J Mol Sci) que recopilaron los datos de expresión génica, de matriz y de protección, y subrayaron el potencial del GHK-Cu para restablecer programas transcripcionales patológicos. Una revisión sistemática de 2026 de Najafi y colaboradores (marco PRISMA) cribó 1.247 registros de 2005–2026 y retuvo 64 para la síntesis cualitativa. Los autores estratificaron por modelo (in vitro, ex vivo, roedor, no roedor, humano) y destacaron la coherencia mecanística: el GHK-Cu como matricriptina, cofactor de cobre de las enzimas de entrecruzamiento lisil oxidasa, organizador de la arquitectura de decorina/GAG, modulador de la señalización antifibrótica mediada por TGF-β3 y regulador de las vías antioxidantes de ferritina-hierro. La evidencia preclínica de regeneración tisular, acción antiinflamatoria, capacidad antioxidante y remodelación génica se juzgó sólida; no obstante, la revisión reclamó de forma explícita ensayos en seres humanos bien diseñados y con potencia adecuada —en particular mediante plataformas de microagujas o de administración potenciada— para salvar la brecha traslacional.
Entre las limitaciones recurrentes de la bibliografía figuran la concentración de la autoría en un reducido número de laboratorios (incluidas entidades comerciales vinculadas al desarrollo cosmético), la heterogeneidad de las formulaciones y de los métodos de administración, la escasez de ensayos controlados aleatorizados independientes a gran escala, la dependencia de criterios de valoración subrogados en lugar de clínicos en muchos estudios piloto en seres humanos y la caracterización incompleta de la especiación del cobre o de la farmacocinética in vivo. Si bien las correlaciones de expresión génica resultan intrigantes, no demuestran causalidad respecto de los resultados a nivel tisular. Los resultados nulos o modestos en algunos modelos de tejido irradiado, de úlcera o de rejuvenecimiento con láser subrayan además la dependencia del contexto. La investigación futura se beneficiaría de métodos analíticos estandarizados, de la replicación independiente y de un diseño de ensayos riguroso centrado en lecturas objetivas de la matriz y funcionales.
Fuentes
- Maquart FX et al. (1988). Stimulation of collagen synthesis in fibroblast cultures by the tripeptide-copper complex glycyl-L-histidyl-L-lysine-Cu²⁺. FEBS Lett. DOI: 10.1016/0014-5793(88)81277-2.
- Simeon A et al. (1999). Expression and activation of matrix metalloproteinases in wounds: modulation by the tripeptide-copper complex glycyl-L-histidyl-L-lysine-Cu²⁺. J Invest Dermatol. PMID: 10571741.
- Pickart L et al. (2014). GHK and DNA: resetting the human genome to health. Biomed Res Int. PMID: 25302294. DOI: 10.1155/2014/151479.
- Pickart L, Margolina A (2018). Regenerative and protective actions of the GHK-Cu peptide in the light of new gene data. Int J Mol Sci. PMID: 29986520. DOI: 10.3390/ijms19071987.
- Najafi N et al. (2026). A Systematic Review of the Mechanisms and Therapeutic Applications of GHK-Cu in Topical Microneedle Delivery: A Case for Expanded Clinical Trials. Arch Intern Med Res. DOI: 10.26502/aimr.0255.
- Informes primarios adicionales indexados en PubMed/Europe PMC (1988–2026) sobre cámaras de herida, transcriptómica, ciencia de la formulación y pequeños estudios piloto clínicos (DOI/PMID específicos disponibles mediante búsquedas en PubMed de “GHK-Cu” OR “glycyl-L-histidyl-L-lysine copper”).
El conjunto de la bibliografía indexada sobre el GHK-Cu ofrece una narrativa preclínica coherente centrada en la reprogramación de la expresión génica y la remodelación de la MEC, pero pone de relieve una necesidad clara de estudios independientes en seres humanos de mayor calidad antes de que pueda fundamentarse cualquier afirmación traslacional.
Toda la información y todos los productos tratados se destinan exclusivamente al uso de laboratorio y de investigación. No para uso humano ni veterinario. No destinados a diagnosticar, tratar, curar ni prevenir ninguna enfermedad.
Más informes
- Favorable and unfavorable findings on PinealonPreclinical in vitro and animal studies report that the tripeptide Pinealon (Glu-Asp-Arg) reduces oxidative stress and preserves dendritic spines in neurodegeneration models, yet human evidence is confined to small uncontrolled Russian obse
- Hallazgos favorables y desfavorables sobre Ara-290Pequeños ensayos aleatorizados patrocinados por la empresa informan de que Ara-290 (cibinetide) se asocia con mejoras en algunas puntuaciones de síntomas neuropáticos y en la abundancia de fibras nerviosas corneales en la neuropatía de fibras pequeñas asociada a sarcoidosis y en la diab de tipo 2
- Hallazgos favorables y desfavorables sobre SelankResuma los hallazgos publicados favorables y desfavorables sobre Selank sin ampliar más allá de esa ficha de catálogo.
Toda la información y los productos tratados son exclusivamente para uso en laboratorio e investigación. No para uso humano ni veterinario. No están destinados a diagnosticar, tratar, curar ni prevenir ninguna enfermedad.